вірус (лат. virus - отрута) - субклітинний інфекційний агент, який може відтворюватися тільки всередині живих клітин організму. За природою віруси є автономними генетичними елементами, що мають позаклітинну стадію в циклі розвитку. Віруси є мікроскопічні частинки, що складаються з молекул нуклеїнових кислот - ДНК або РНК (деякі, наприклад мімівіруса, мають обидва типи молекул), ув'язнені в білкову оболонку, здатні інфікувати живі організми. Білкову оболонку, в яку упакований геном, називають "капсид". Наявність капсида відрізняє віруси від вірусоподібних інфекційних нуклеїнових кислот - віроідов. Віруси, за рідкісним винятком, містять тільки один тип геномної нуклеїнової кислоти. Класифікують ДНК-віруси і РНК-віруси, на чому заснована класифікація вірусів по Балтімор. Раніше до вірусів також помилково відносили пріони, однак згодом виявилося, що ці збудники є особливими інфекційні білки і не містять нуклеїнових кислот. Віруси є облігатними паразитами, так як не здатні розмножуватися поза клітиною. Поза клітини вірусні частки не проявляють ознаки живого і поводяться як частки органічних полімерів. Від живих організмів-внутрішньоклітинних паразитів відрізняються повною відсутністю основного та енергетичного обміну, і відсутністю складного елемента живих систем - апарату трансляції (синтезу білка), ступінь складності якого перевищує таку самих вірусів. В даний час відомі віруси, що розмножуються в клітинах рослин, тварин, грибів і бактерій (останніх зазвичай називають бактеріофагами або фагами). Незважаючи на деякі загальні закономірності будови і стратегії розвитку (пов'язані з функціональної спільністю), віруси не мають спільного походження. Це підтверджується тим, що геноми вірусів, які заражають далекі між собою групи організмів, структурно споріднені, але при тому мають загальну структуру генів і регуляторних елементів, кодують структурно близькі білки, мають загальні механізми регуляції експресії генів. Виявлено також віруси, що вражають інші віруси (віруси-сателіти). Вперше існування вірусу (як нового типу збудника хвороб) довів в 1892 році російський вчений Д. І. Івановський. Після багаторічних досліджень захворювань тютюнових рослин, в роботі, датованій тисячі вісімсот дев'яносто два роком, Д. І. Івановський приходить до висновку, що тютюнова мозаїка викликається «бактеріями, що проходять через фільтр Шамберлана, які, проте, не спроможні рости на штучних субстратах». П'ять років по тому, при вивченні захворювань великої рогатої худоби, а саме - ящура, було виділено аналогічний фільтрівний мікроорганізм. А в 1898 році, при відтворенні дослідів Д. Іванівського голландським ботаніком М. Бейеринком, він назвав такі мікроорганізми «фільтрівними вірусами». В скороченому вигляді, ця назва і стало позначати дану групу мікроорганізмів. У 1901 році було виявлено перше вірусне захворювання людини - жовта лихоманка. Це відкриття було зроблено американським військовим хірургом У. Рідом і його колегами. У 1911 році Френсіс Раус довів вірусну природу раку - саркоми Рауса (лише в 1966 році, через 55 років, йому була вручена за це відкриття Нобелівську премію з фізіології і медицині). У наступні роки вивчення вірусів відіграло важливу роль у розвитку епідеміології, імунології, молекулярної генетики та інших розділів біології. Так, експеримент Херші-Чейз став вирішальним доказом ролі ДНК у передачі спадкових властивостей. У різні роки ще як мінімум шість Нобелівських премій по фізіології і медицині і три Нобелівських премії з хімії були вручені за дослідження, безпосередньо пов'язані з вивченням вірусів. У 2002 році в Нью-Йоркському університеті був створений перший синтетичний вірус (вірус поліомієліту). Просто організовані віруси складаються з нуклеїнової кислоти та кількох білків, що утворюють навколо неї оболонку - капсид. Прикладом таких вірусів є вірус тютюнової мозаїки. Його капсид містить один вид білка з невеликою молекулярною масою. Складно організовані віруси мають додаткову оболонку - білкову або ліпопротеїнову; іноді в зовнішніх оболонках складних вірусів крім білків містяться вуглеводи. Прикладом складно організованих вірусів служать збудники грипу і герпесу. Їх зовнішня оболонка - це фрагмент ядерної або цитоплазматичної мембрани клітини-хазяїна, з якої вірус виходить в позаклітинне середовище. структура Приклади структур ікосаедрічеськая віріонів. А. Вірус, який не має ліпідної оболонки (наприклад, вірусів). B. Оболонковий вірус (наприклад, герпесвірус). Цифрами позначені: (1) капсид, (2) геномна нуклеїнова кислота, (3) капсомер, (4) нуклеокапсид, (5) віріон, (6) ліпідна оболонка, (7) мембранні білки оболонки. Вірусні частинки (віріони) представляють собою білкову капсулу - капсид, що містить геном вірусу, представлений однією або декількома молекулами ДНК або РНК. Капсид побудований з капсомеров - білкових комплексів, що складаються, в свою чергу, з протомеров. Нуклеїнова кислота в комплексі з білками позначається терміном нуклеокапсид. Деякі віруси мають також зовнішню ліпідну оболонку. Розміри різних вірусів коливаються від 20 (парвовіруси) до 500 (мімівіруса) і більш нанометрів. Віріони часто мають правильну геометричну форму (ікосаедр, циліндр). Така структура капсида передбачає ідентичність зв'язків між складовими її білками, і, отже, може бути побудована з стандартних білків одного або декількох видів, що дозволяє вірусу економити місце в геномі. </ Span> (1) РНК-геном вірусу, (2) капсомер, що складається всього з одного протомеров, (3) зрілий ділянку капсида. '(1) РНК-геном вірусу, (2) капсомер, що складається всього з одного протомеров, (3) зрілий ділянку капсида. механізм інфікування Умовно процес вірусного інфікування в масштабах однієї клітини можна розбити на кілька взаімоперекривающіхся етапів: 1.Прісоедіненіе до клітинної мембрани - так звана адсорбція. Зазвичай для того, щоб віріон адсорбувався на поверхні клітини, вона повинна мати у складі своєї плазматичної мембрани білок (часто глікопротеїн) - рецептор, специфічний для даного вірусу. Наявність рецептора нерідко визначає коло господарів даного вірусу, а також його тканеспеціфічность. 2.Пронікновеніе в клітку. На наступному етапі вірусу необхідно доставити всередину клітини свою генетичну інформацію. Деякі віруси переносять також власні білки, необхідні для її реалізації (особливо це характерно для вірусів, що містять негативні РНК). Різні віруси для проникнення в клітину використовують різні стратегії: наприклад пікорнавіруси впорскують свою РНК через плазматичну мембрану віріони ортомиксовирусов захоплюються клітиною в ході ендоцитозу, потрапляють в кисле середовище лізосом, де відбувається їх остаточне дозрівання (депротеїнізація вірусної частинки), після чого РНК в комплексі з вірусними білками долає лізосомальну мембрану і потрапляє в цитоплазму. Віруси також розрізняються за локалізацією їх реплікації, частину вірусів (наприклад, ті ж пікорнавіруси) розмножується в цитоплазмі клітини, а частина (наприклад, ортоміксовіруси) в її ядрі. 3.Перепрограммірованіе клітини. При зараженні вірусом в клітці активуються спеціальні механізми противірусного захисту. Заражені клітини починають синтезувати сигнальні молекули - інтерферони, які переводять навколишні здорові клітини в противірусну стан і активують системи імунітету. Пошкодження, що викликаються розмноженням вірусу в клітці, можуть бути виявлені системами внутрішнього клітинного контролю, і така клітина повинна буде «покінчити життя самогубством» в ході процесу, званого апоптозом або програмованої клітинної смерті. Від здатності вірусу долати системи противірусного захисту безпосередньо залежить його виживання. Не дивно, що багато вірусів (наприклад, пікорнавіруси, флавівіруси) в ході еволюції набули здатності пригнічувати синтез інтерферонів, апоптозну програму і так далі. Крім придушення противірусного захисту, віруси прагнуть створити в клітці максимально сприятливі умови для розвитку свого потомства. Хрестоматійним прикладом перепрограмування систем клітини-господаря є трансляція РНК ентеровірусів (сімейство пікорнавіруси). Вірусна протеаза розщеплює клітинний білок eIF4G, необхідний для ініціації трансляції переважної більшості клітинних мРНК (що транслюються по так званому кеп-залежному механізму). При цьому ініціація трансляції РНК самого вірусу відбувається іншим способом (IRES-залежний механізм), для якого цілком достатньо відрізаного фрагмента eIF4G. Таким чином, вірусні РНК набувають ексклюзивні «права» і не конкурують за рибосоми з клітинними. 4.Персістенція. Деякі віруси можуть переходити в латентний стан (так звана персистенція для вірусів еукаріот або лізогенія для бактеріофагів - вірусів бактерій), слабо втручаючись в процеси, що відбуваються в клітині, і активуватися лише за певних умов. Так побудована, наприклад, стратегія розмноження деяких бактеріофагів - до тих пір, поки заражена клітина знаходиться в сприятливому середовищі, фаг не вбиває її, успадковується дочірніми клітинами і нерідко інтегрується в клітинний геном. Однак при попаданні зараженої лізогенним фагом бактерії в несприятливе середовище, збудник захоплює контроль над клітинними процесами так, що клітина починає виробляти матеріали, з яких будуються нові фаги (так звана літична стадія). Клітка перетворюється на фабрику, здатну виробляти багато тисяч фагів. Зрілі частинки, виходячи з клітини, розривають клітинну мембрану, тим самим вбиваючи клітину. З персистенцією вірусів (наприклад, паповавирусов) пов'язані деякі онкологічні захворювання. 5.Створення нових вірусних компонентів. Розмноження вірусів в найзагальнішому випадку передбачає три процеси - 1) транскрипція вірусного генома - тобто синтез вірусної мРНК, 2) її трансляція, тобто синтез вірусних білків і 3) реплікація вірусного генома (в деяких випадках, коли генетична інформація вірусу закодована у вигляді РНК геномна РНК одночасно грає роль мРНК, і, отже, процес транскрипції в паразітіруемой клітці не відбувається за непотрібністю). У багатьох вірусів існують системи контролю, що забезпечують оптимальне витрачання біоматеріалів клітини-господаря. Наприклад, коли вірусної мРНК накопичено достатньо, транскрипція вірусного генома пригнічується, а реплікація навпаки - активується. 6.Созреваніе віріонів і вихід з клітини. Зрештою, новосинтезовані геномні РНК або ДНК одягаються відповідними білками і виходять з клітини. Слід сказати, що активно розмножується вірус не завжди вбиває клітину-господаря. У деяких випадках (наприклад, ортоміксовіруси) дочірні віруси відгалужуються від плазматичної мембрани, не викликаючи її розриву. Таким чином, клітина може продовжувати жити і продукувати вірус. Класифікація В таксономії живої природи віруси виділяються в окремий таксон Vira, який утворює в класифікації Systema Naturae 2000 разом з доменами Bacteria, Archaea і Eukaryota кореневої таксон Biota. Протягом XX століття в систематиці висувалися пропозиції про створення виділеного таксона для неклітинних форм життя (Aphanobionta Novak, 1930; надцарство Acytota Jeffrey, 1971; Acellularia), проте такі пропозиції не були кодифіковані. Систематику і таксономії вірусів кодифікує і підтримує Міжнародний Комітет по таксономії Вірусів (International Committee on Taxonomy of Viruses, ICTV), що підтримує також і таксономічну базу The Universal Virus Database ICTVdB. Класифікація ICTV Міжнародним Комітетом по таксономії Вірусів в 1966 році була прийнята система класифікації вірусів заснована на відмінності типу (РНК і ДНК), кількості молекул нуклеотіческіх кислот (одно- і двох-цепочечние) і на наявність чи відсутність оболонки ядра. Система класифікації являє собою серію ієрархічних таксонів: Загін (-virales) Сімейство (-viridae) Підродина (-virinae) Рід (-virus) Вид (-virus) Класифікація Балтімора Нобелівський лауреат, біолог Девід Балтімор, запропонував свою схему класифікації вірусів, грунтуючись на відмінностях в механізмі продукції мРНК. Ця система включає в себе сім основних груп [9] [10]: (I) Віруси, що містять двуцепочечную ДНК і не мають РНК-стадії (наприклад, герпесвіруси, поксвирусов, паповавіруси, мімівіруса). (II) Віруси, що містять двуцепочечную РНК (наприклад, ротавіруси). (III) Віруси, що містять одноланцюжкові молекулу ДНК (наприклад, парвовіруси). (IV) Віруси, що містять одноланцюжкові молекулу РНК позитивної полярності (наприклад, пікорнавіруси, флавівіруси). (V) Віруси, що містять одноланцюжкові молекулу РНК негативної або подвійний полярності (наприклад, ортоміксовіруси, філовірусів). (VI) Віруси, що містять одноланцюжкові молекулу РНК і мають в своєму життєвому циклі стадію синтезу ДНК на матриці РНК, ретровіруси (наприклад, ВІЛ). (VII) Віруси, що містять двуцепочечную ДНК і мають в своєму життєвому циклі стадію синтезу ДНК на матриці РНК, ретроідние віруси (наприклад, вірус гепатиту B). В даний час, для класифікації вірусів використовуються обидві системи одночасно, як доповнюють один одного Подальше поділ проводиться на основі таких ознак як структура генома (наявність сегментів, кільцева або лінійна молекула), генетична схожість з іншими вірусами, наявність ліпідної оболонки, таксономічна приналежність організму-господаря і так далі. Історія досліджень
правити
Життєдіяльність вірусів і як їх нейтралізувати


-
Конусно-лучевая компьютерная томография
Детали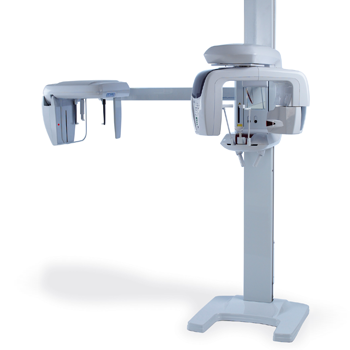
-
Рентген диагностика
Детали
-
Протезирование зубов
Детали
-
Зуботехническая лаборатория
Детали
-
Лечение, отбеливание и удаление зубов
Детали
-
Исправление прикуса. Детская стоматология
Детали
Рубрики |
Новости |
|
Лицензия МЗ Украины
АЕ №197134 от 13.06.2013г Акредитационный сертификат МЗ Украины МЗ №011846 от 30.01.2014г. |
| О нас |
| Центр располагается в отдельно стоящем 3-х этажном здании общей площадью около 1700 кв. м. Начиналось же все в 1993 г., тогда у городской стоматологической поликлиники № 3 взяли в аренду ... |
|
| Записаться на приём |
|
Наш центр находится в восточной
части города Луганска на кв.Волкова, 3А Телефоны: (0642) 47 20 22 (0642) 47 12 21 Тел. моб.: +38 050 367-36-74 +38 095 638-47-16 e-mail: [email protected] Режим работы: с 9:00 до 18:00 |
|